Chez l’Homme (et la souris), l’immense majorité des gènes sont exprimés à partir des deux allèles parentaux. Les gènes soumis à l’empreinte parentale échappent à cette norme : ils sont préférentiellement exprimés par l’allèle maternel ou paternel. Pour certains gènes soumis à l’empreinte, le ratio d’expression allélique maternel/paternel est variable selon le tissu étudié. Des déséquilibres des niveaux d’expression des gènes soumis à l’empreinte sont associés à de nombreuses maladies du développement.
Pour le locus à empreinte Mest/Copg2 (impliqué dans des maladies neurodéveloppementales), Copg2 est biallélique dans tous les tissus, sauf dans le cerveau où il est maternel. Le gène antisens de Copg2, Mest, n’est exprimé que par l’allèle paternel. Or, dans le cerveau, l’ARN de Mest est présent sous une forme longue, Mest-XL, qui rentre dans le ‘territoire transcriptionnel’ de Copg2. Les mécanismes de l’expression maternelle de Copg2 sont mal connus. L’hypothèse prévalente est que Mest-XL entrerait en collision avec l’ARN de Copg2 transcrit depuis la direction opposée. L’ARN de Copg2 paternel serait déstabilisé. Finalement, Copg2 ne serait exprimé que depuis l’allèle maternel.
Lorsque les travaux présentés ici ont débuté, plusieurs questions restaient en suspens : un système de cerveau in vitro comme les organoïdes peut-il reproduire la complexité de la régulation génique au locus Mest/Copg2 in vivo ? Mest-XL est-il dû à l’allongement de Mest ? Quand Mest-XL apparaît-il ? Est-il responsable de l’extinction du Copg2 paternel ? D’autres mécanismes sont-ils impliqués dans l’expression préférentiellement maternelle de Copg2 ?
Ce sont les questions auxquelles ont répondu une collaboration internationale menée par Philippe Arnaud et Franck Court – iGRED, Clermont-Ferrand –, et Tristan Bouschet à l’IGF dans l’équipe « Génomique Fonctionnelle des Gènes Soumis à Empreinte Parentale » animée par Laurent Journot, impliquant deux doctorantes (Anne-Charlotte Fromaget et Nuttamonpat Gumpangseth), Céline Lemmers (PVM), Davide Normanno et Floric Slimani (laboratoire d’Edouard Bertrand, IGH), un laboratoire canadien (Louis Lefebvre, University of British Columbia, Vancouver) et un laboratoire japonais (Kazuhiko Nakabayashi, Department of Maternal-Fetal Biology, Tokyo).
Ces équipes ont utilisé des organoïdes de cerveau (générés à partir de cellules souches embryonnaires de souris), des tissus issus de souris knockout, des lentivirus, des techniques de génie génétique (CRISPR/Cas9) qui répriment l’expression ou l’allongement de Mest en Mest-XL, ainsi que des techniques hautement résolutives de mesure de l’expression des gènes (RNA-seq, RNA-FISH séquentiel, capture des interactions au sein de la chromatine). Leurs conclusions sont :
- Les organoïdes reproduisent le cerveau in vivo pour l’expression génique au locus Mest/Copg2
- Mest-XL apparaît concomitamment avec la neurogenèse
- Mest-XL est le produit de l’allongement de Mest
- Mest-XL contrôle l’expression de Copg2 paternel
- Copg2 est aussi régulé par un enhancer et la conformation allèle-spécifique de la chromatine.
Cette étude met en lumière une complexité inattendue dans la régulation de l’expression des gènes soumis à empreinte parentale au cours du neurodéveloppement. Elle soulève aussi de nombreuses questions. Pourquoi Mest réprime-t-il Copg2 ? Cette régulation est-elle spécifique à un type cellulaire ? Quelle est l’importance de ce mécanisme dans les maladies neurodéveloppementales liées au locus Mest/Copg2 ?
Ce travail vient d’être publié dans la revue Nature Communications.
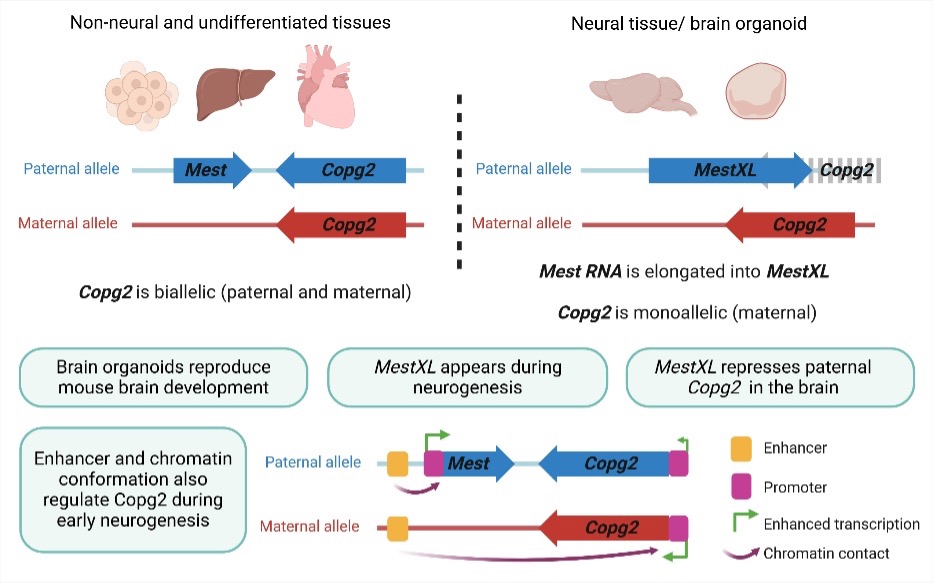
Dans les tissus non-neuraux et indifférenciés (comme les cellules souches embryonnaires), Mest est paternel et Copg2 est biallélique. Dans le cerveau et dans les organoïdes générés in vitro à partir de cellules souches embryonnaires, l’ARN de Mest s’allonge (on parle de Mest-XL). Mest-XL est si long qu’il rentre dans le territoire transcriptionnel de Copg2. Copg2 n’est plus qu’exprimé par l’allèle maternel. L’article de Perillous, Fromaget et al montre que c’est l’allongement de Mest-XL qui contrôle l’expression maternelle de Copg2. Un mécanisme additionnel favorise l’expression du Copg2 maternel au détriment de l’allèle paternel : la conformation de la chromatine, différente entre les chromosomes maternel et paternel, fait qu’un enhancer (une séquence régulatrice distante) n’est actif que sur le chromosome maternel. Figure créée par BioRender.com